01 / 研究问题
多肽链上换一个残基,会怎样改变它与蛋白的结合?
02 / 创新思路
将能量扰动、几何环境和进化兼容性等权排序融合;残差校准版单独报告。
03 / 方法机制
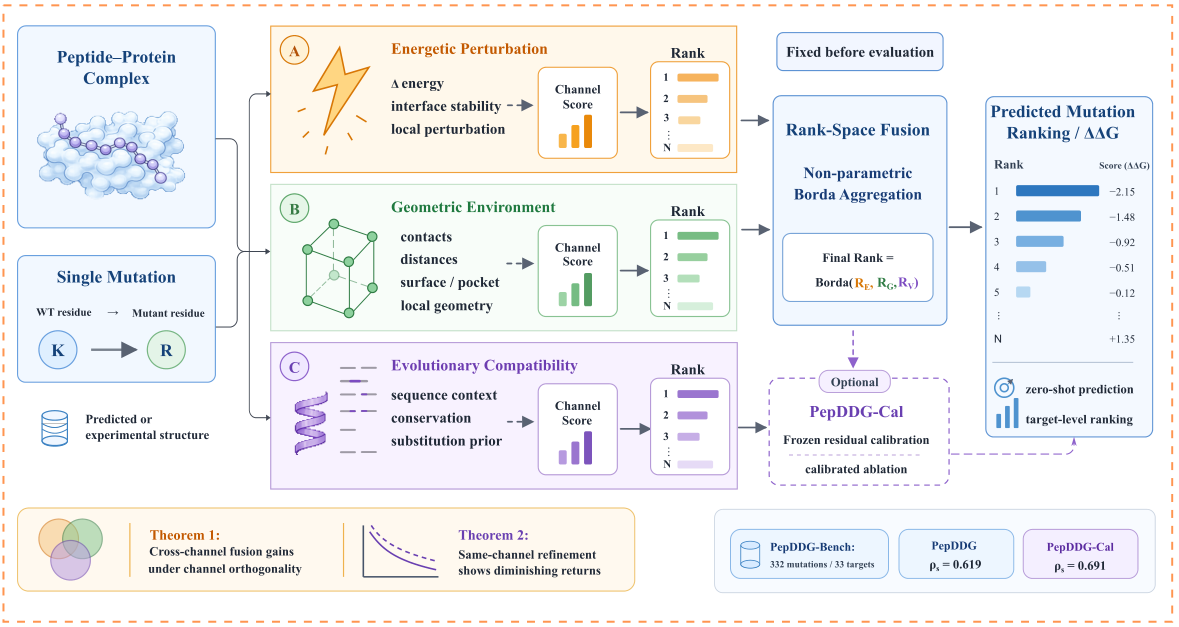
先把能量、几何和进化兼容性信号分别转成排序,再用等权 Borda 排名求和融合。核心输出是多肽链单点突变的相对顺序;残差校准版单独报告,不与零样本排序混用。
04 / 实验设置
作者提供 V4:33 个靶标的 332 个多肽链单点突变,使用晶体结构。
Author-provided V4 · accepted NeurIPS 2026 · 来源 ↗
05 / 主结果
总体 Spearman 相关系数:零样本 PepDDG 0.619;单独校准的 PepDDG-Cal 0.691。
AUTHOR-AUTHORIZED V4 / ORIGINAL FIGURE 1
三种证据,同一个排序问题。
PepDDG 将能量扰动、几何环境和进化兼容性转换到排序空间,以等权 Borda rank-sum 融合。较大的分数表示更可能削弱结合;输出是突变顺序,不是经过校准的 kcal/mol 预测。
01 / 能量扰动
OpenMM、Amber ff14SB / OBC2,以配对 wild-type / mutant 重启构建结合能代理和界面交互代理。
02 / 几何环境
wild-type 结构中的重原子链间接触(8 Å)与 Cα 邻居(10 Å)。只依赖位置,不能区分同一位置的不同替换。
03 / 进化兼容性
预训练 ProteinMPNN 的 complex / isolated-chain 条件似然差与突变似然比。无任务特定微调;预训练模型本身来自学习。
部署时在同一 target 的候选间排序;主论文 pooled benchmark 在完整 cohort 内排序。训练免除指没有任务特定训练或学习融合权重,不表示使用的基础模型没有预训练。
DATA / CRYSTAL-STRUCTURE BENCHMARK
332 个突变,33 个 target。
PepDDG-Bench 来自 SKEMPI v2:单点、peptide-chain 突变,一方长度为 5–80 个残基;排除超短链、饱和突变占主导的 target 与结构准备失败。主基准输入为对应 PDB 晶体结构。实验 ΔΔG > 0 表示结合去稳定化。
V4 §3、§6.1、Table 1(第 3、7 页)。指标为 pooled Spearman ρ;95% CI 使用 target-stratified bootstrap。以下为 V4 报告值。
横向滑动或聚焦后用方向键查看全部列 →
| 方法 | 协议 | ρ ↑ | 95% CI |
|---|---|---|---|
| PepDDG | Zero-shot / 零样本 | 0.619 | [0.519, 0.708] |
| PepDDG-Cal | Calibrated / 校准版 | 0.691 | [0.612, 0.770] |
| LOTO ridge fusion | Supervised fusion / 监督融合 | 0.448 | [0.327, 0.573] |
| Flex ddG | Empirical / 经验方法 | 0.489 | [0.367, 0.596] |
| FoldX BuildModel | Empirical / 经验方法 | 0.488 | [0.385, 0.589] |
| Evolutionary only | Component / 单通道 | 0.504 | — |
| Energetic only | Component / 单通道 | 0.473 | — |
| Geometric only | Component / 单通道 | 0.469 | — |
| BA-DDG (BA-Cycle) | Partial: 238 / 31 targets | 0.423 | [0.296, 0.529] |
未标 partial 的行使用共同覆盖 332 mutations / 33 targets。PepDDG-Cal 为冻结残差校准版,不能把 0.691 称为 zero-shot。监督方法仅作背景比较;与部分监督基线的差异未达到校正后的显著性,不宣称全面优于监督方法。
ABLATION / WHAT THE CHANNELS CONTRIBUTE
互补,比重复更有信息。
跨通道消融
单通道 ρ 为 0.469–0.504;双通道组合为 0.568–0.574;三个通道为 0.619。通道间相关为 0.33、0.40、0.41,相关较低不等于统计独立。
V4 Figure 2 · pp. 7–8 · N=332增加信号并非总有收益
能量通道界面代理单独为 0.477,完整 binding proxy 为 0.316,两者 rank-sum 为 0.473。可选第四个 alanine 通道只在 N=303 的覆盖子集上由 0.633 到 0.637,不能与 N=332 的 0.619 直接比较。
V4 Appendix Table 9 · p. 23; Figure 2理论分析依赖给定的 rank-covariance 条件,不保证任意通道融合都提高效果。
BOUNDED DIAGNOSTICS / STRUCTURE INPUTS
强结果,要带着边界一起看。
短肽与环肽
短肽(<20 residues):ρ=0.813,CI [0.684, 0.909],47 mutations / 5 targets。环肽:ρ=0.872,CI [0.753, 0.926],35 mutations / 4 targets。
这是保留的回顾性诊断 cohort;不是前瞻性发现。4 个环肽 target 的精确 sign-flip 检验最小 p=0.0625,不能声称 p<0.05。
V4 Table 3 · p. 9; Appendix C.9 · p. 23预测结构是单独诊断
在匹配的 109 个突变中,Boltz-2 predicted-input ρ=0.621,crystal-input ρ=0.592。该 cohort 与主基准 332 个不同,不能解释为预测结构普遍优于晶体。
使用最高 ipTM 的 wild-type sample,未微调结构预测器。较大的 pose 错误和突变引发的 binding-mode 改变未被显式建模。
V4 §6.6 · pp. 8–9FAILURE REGIME / LIMITS
稳定化突变仍是弱项。
横向滑动查看全部列 →
| 版本 | 稳定化 ΔΔG<0 N=38 / 16 targets | 去稳定化 ΔΔG>0 N=286 |
|---|---|---|
| PepDDG (zero-shot) | −0.137 | 0.585 |
| PepDDG-Cal | 0.297 | 0.650 |
V4 Table 16,第 27 页。符号分组排除中性突变,所以 N=324;主基准为 332。不能用校准版 0.297 代替零样本的 −0.137。
当前范围是单点替换和给定的 wild-type binding mode。多点协同效应、自动通道发现和广泛的前瞻性验证仍待研究。排序相关不是绝对 ΔΔG 误差,也不是实验疗效。
来源:作者提供的 V4 方法与结果摘录。NeurIPS 2026 已接收;以上结果对应 V4。
官方会议列表 ↗06 / 消融与局限
稳定化突变和不准确的结合构象仍容易让方法失效;排序相关性也不等于绝对自由能误差。
这里评价的是突变排序,不是以 kcal/mol 衡量的绝对误差。范围限于单点替换;稳定化突变和不准确的结合构象仍是重要失效场景。结果对应作者提供的 V4。
07 / 个人贡献
作者信息见论文。
08 / 论文与代码
引用这项研究
PepDDG: Peptide–Protein Binding ΔΔG Prediction via Information Channel Decomposition. NeurIPS 2026, 2026. https://neurips.cc/Downloads/2026